Waddington 的发育景观隐喻获实验数据支持:单细胞测序正在绘制细胞命运的真实地形图
来源Quanta查看原文
速览
- Waddington 的发育景观隐喻提出于 1950 年代,长期被视为概念工具而非可验证模型。
- 单细胞 RNA 测序和 UMAP 降维使研究者能从实验数据重建细胞状态空间的实际地形。
- Waddington 的核心洞见——渐进发育、离散状态、分叉决策、渠道化鲁棒性——基本得到实验支持。
- 真实景观是动态的:细胞通过化学信号和机械力相互协商,共同塑造自身所处的景观。
- 景观中的时间并非真实时间而是伪时间,且细胞在吸引子盆地中的演化更接近随机。
- Sui Huang 2007 年发现 GATA1 和 PU.1 两个蛋白主导髓系祖细胞向红细胞或白细胞的分化。
- Briscoe 和 Rand 用动力系统理论发现少数关键基因驱动命运决定,其余网络负责执行。
- 癌症可被理解为景观中的一个吸引子状态,治疗思路可转向引导分化而非全部杀死。
- 该框架为再生医学、干细胞工程和农业应用提供了理性设计的基础。
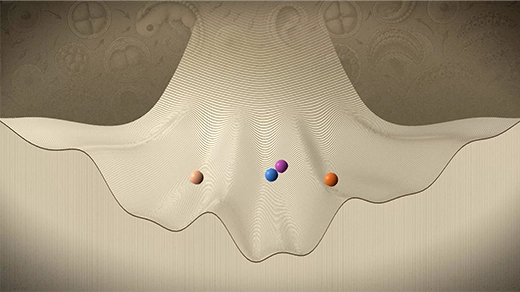
Quanta 杂志刊文回顾了英国生物学家 C.H. Waddington 在 1950 年代提出的发育景观(epigenetic landscape)隐喻——将胚胎干细胞的分化过程比作小球沿山谷滚落,在分叉点做出命运抉择。这一图像长期被视为概念脚手架而非可验证的物理模型。过去二十年,单细胞 RNA 测序、UMAP 降维和网络流模型等技术使研究者能够从数千个细胞的实验数据中重建细胞状态空间的实际地形,发现 Waddington 的核心洞见——发育是渐进的、细胞状态是离散的、分叉对应命运决定、渠道化意味着鲁棒性——基本成立,但真实景观远比原初设想复杂:景观本身随细胞发育而动态重塑,不存在固定的全局引力,细胞通过化学信号和机械力相互协商共同构建自身所处的景观。这一框架正在被应用于再生医学、干细胞工程和癌症治疗,Sui Huang 提出癌症可被视为景观中的一个吸引子状态,治疗思路从杀死癌细胞转向引导其分化。
关键事实
- C.H. Waddington 在 1940 年代至 1957 年著作《The Strategy of the Genes》中提出发育景观隐喻,用小球滚落山谷分叉的图像描述胚胎干细胞的分化过程。
- Waddington 用绳网模型解释景观地形的成因:基因如同钉子,基因间的调控关系如同绳索,共同拉扯决定景观形状。
- 2007 年 Sui Huang 描述了髓系祖细胞分化为红细胞和白细胞的分叉过程,该过程由 GATA1 和 PU.1 两个蛋白的浓度主导。
- 单细胞 RNA 测序技术可同时测量大量细胞的基因表达水平,UMAP 降维将高维数据投影到二维平面,网络流模型则呈现细胞沿景观滚落的轨迹。
- James Briscoe 与 David Rand 合作,用动力系统理论分析发育景观,发现少数关键基因驱动细胞命运决定,其余基因网络负责执行决策。
- Julie Theriot 指出单细胞 RNA 测序并非表征细胞状态的唯一或最佳方法,RNA 转录本与基因表达之间并非完美对应,降维过程常反映研究者对细胞聚类的预设假设。
本站视角
这项工作对多个群体具有直接意义。对从事干细胞工程和再生医学的研究者而言,景观框架提供了一种从试错走向理性设计的路径:如果能够精确绘制细胞状态空间的地形图并定位分叉点,就有可能设计出将细胞群体引导至目标状态的方案,而非依赖经验性的筛选。对癌症研究者而言,Sui Huang 将癌症视为景观中一个可被多种路径到达的吸引子状态,这一视角可能改变治疗策略——从「全部杀死」转向「引导分化」,尽管这一思路目前仍处于理论探索阶段,尚未有临床验证。对计算生物学和单细胞数据分析领域而言,本文揭示了一个关键的方法论问题:UMAP 等降维工具在压缩数据时往往嵌入了研究者对细胞如何聚类的预设假设,这意味着景观的「地形」在某种程度上是被构建出来的,而非纯粹被发现的。Julie Theriot 的警告值得重视——单细胞 RNA 测序并非表征细胞状态的唯一或最佳方法,RNA 转录本与基因表达之间并非完美对应。我们认为,Waddington 景观框架的价值在于它提供了一个统一的语言,使实验数据、数学模型和理论预测能够相互对话,但需要警惕的是,将隐喻数学化并不自动等于揭示真相——动力系统模型中的吸引子、伪时间等概念是对生物过程的抽象,其与真实发育过程的对应关系仍需更多实验验证。特别是伪时间在吸引子盆地中失效的问题,提示我们当前的数学工具可能尚未捕捉到细胞状态维持和转变的全部机制。此外,本文引用的研究多来自 Briscoe、Rand、Huang 等少数团队,结论的普适性需要更多独立实验室的重复和拓展。
背景与影响
20 世纪中叶,达尔文进化论与孟德尔遗传学在「现代综合」框架下统一,1953 年 DNA 双螺旋结构的发现进一步强化了基因中心论。但 Waddington 等发育生物学家意识到,基因如何精确指导胚胎发育为具有多种组织类型的复杂有机体,仍是一个未解之谜。Waddington 在 1940 年代提出发育景观隐喻,1957 年在《The Strategy of the Genes》中用绳网模型解释景观地形的成因,将基因调控网络的概念以直观方式呈现。然而在随后数十年中,由于缺乏数学内容和实验验证手段,这一隐喻被批评为「陈词滥调而非有意义的解释」。转折出现在近二十年:单细胞 RNA 测序技术使研究者能够同时测量数千个细胞的基因表达,UMAP 降维和网络流模型则提供了将高维数据映射为景观地形的数学工具。Sui Huang 2007 年对髓系祖细胞分化的研究首次用实验数据描述了 Waddington 式的分叉。Briscoe 和 Rand 用动力系统理论进一步揭示,景观的高度反映细胞状态的稳定性,吸引子对应稳定的细胞类型,而景观本身随细胞发育不断重塑。这意味着 Waddington 的隐喻不仅是概念工具,更可能成为理解和操控细胞命运的实际地图。该框架的应用前景包括:通过理解景观拓扑和分叉位置,精确引导细胞群体到达目标状态而非依赖试错;将癌症视为可被引导分化的吸引子状态;以及实现组织再生和细胞类型转化。
本文由 AI 辅助整理自公开信源,事实部分以原文为准;「本站视角」一节为编辑部判断,欢迎指正。版权归原作者所有,如有异议请联系我们。